Estrutura de um clorolplasto
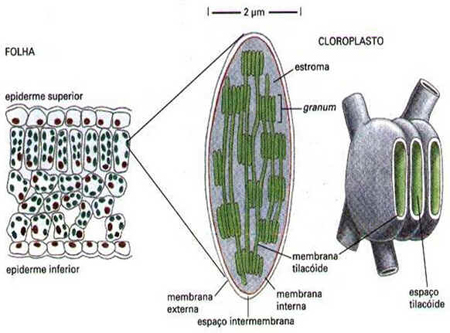
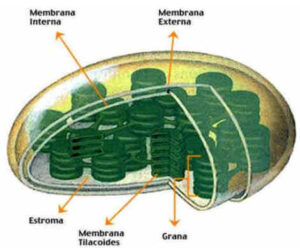
A maioria dos cloroplastos são bolhas ovais, mas eles podem vir em todos os tipos de formas, tais como estrelas, xícaras, e fitas. Alguns cloroplastos são relativamente pequenos em comparação com a célula, enquanto outros podem levar-se a maior parte do espaço no interior da célula.Membrana externa – O exterior do cloroplasto é protegido por uma membrana exterior lisa. Membrana interna – Apenas dentro da membrana externa é a membrana interior, que controla quais as moléculas podem passar para dentro e para fora do cloroplasto. A membrana externa, a membrana interior, e o fluido entre elas formam o envelope de cloroplasto. Estroma – O estroma é o líquido dentro do cloroplasto onde outras estruturas, tais como as tilacóides flutuar. Tilacóides – Flutuando no estroma é uma coleção de sacos contendo clorofila chamada tilacóides. Os tilacóides são muitas vezes organizadas em pilhas chamados granum. O granum estão ligados por estruturas semelhantes a discos chamados lamela. Pigmentos – Pigmentos dar o cloroplasto ea planta a sua cor. O pigmento mais comum é a clorofila, que dá plantas sua cor verde. A clorofila ajuda a absorver a energia da luz solar. Outros – Os cloroplastos têm seu próprio DNA e ribossomos para a produção de proteínas a partir do RNA.Outras funções Outras funções de cloroplastos incluem a luta contra as doenças como parte da célula do sistema imunológico, o armazenamento de energia para a célula, e produção de ácidos aminados para a célula. A Fotossíntese Os cloroplastos e bactérias fotossintetizantes obtêm elétrons de alta energia por meio de fotossistemas capazes de capturar elétrons excitados, quando a luz solar é absorvida pelas moléculas de clorofila. Os fotossistemas são constituídos por um complexo de proteínas e pigmentos precisamente ordenados, em que a fotossíntese ocorre.
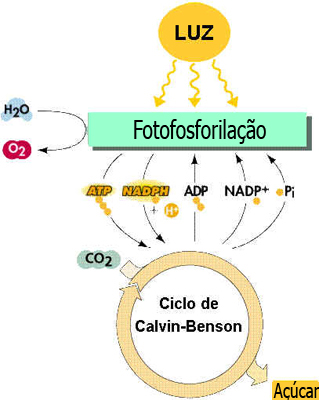 Processo de Fotossíntese
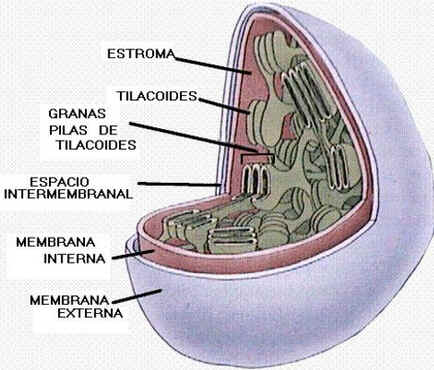
Desenho esquemático de um corte de um cloroplastos e suas estruturas internas
As membranas tilacóides contém o equipamento de transdução de energia: as proteínas coletoras de luz, os centros de reação, as cadeias de transporte de elétrons e ATP sintase. Possuem quantidades quase iguais de lipídeos e de proteínas. A membrana tilacóide, como a membrana mitocondrial interna, é impermeável a maioria das moléculas e íons. A membrana externa de um cloroplasto, como a de uma mitocôndria, é altamente permeável a pequenas moléculas e íons. O estroma contém as enzimas que utilizam o NADPH e o ATP sintetizados pelos tilacóides para transformar gás carbônico em glicídeos. Os cloroplastos possuem seu próprio DNA e o equipamento para replicá-lo e expressá-lo. No entanto, os cloroplastos (como as mitocôndrias) não são autônomos: também possuem proteínas codificadas pelo DNA nuclear. Cloroplasto – Biologia Cloroplasto, estrutura dentro das células de plantas e algas verdes que é o local da fotossíntese, processo pelo qual a energia da luz é convertida em energia química, resultando na produção de oxigênio e compostos orgânicos ricos em energia. As cianobactérias fotossintéticas são parentes próximos de vida livre dos cloroplastos; a teoria endossimbiótica postula que cloroplastos e mitocôndrias (organelas produtoras de energia em células eucarióticas) são descendentes de tais organismos. Características dos cloroplastos Os cloroplastos são um tipo de plastídio – um corpo redondo, oval ou em forma de disco que está envolvido na síntese e armazenamento de alimentos. Os cloroplastos se distinguem de outros tipos de plastídios por sua cor verde, que resulta da presença de dois pigmentos, clorofila ae clorofila b. Uma função desses pigmentos é absorver a energia da luz. Nas plantas, os cloroplastos ocorrem em todos os tecidos verdes, embora estejam concentrados principalmente nas células do parênquima do mesofilo da folha. Os cloroplastos têm aproximadamente 1–2 µm (1 µm = 0,001 mm) de espessura e 5–7 µm de diâmetro. Eles são encerrados em um envelope de cloroplasto, que consiste em uma membrana dupla com camadas externas e internas, entre as quais está uma lacuna chamada de espaço intermembrana. Uma terceira membrana interna, extensamente dobrada e caracterizada pela presença de discos fechados (ou tilacóides), é conhecida como membrana tilacóide. Na maioria das plantas superiores, os tilacóides são organizados em pilhas compactas chamadas grana (granum singular). Os grana são conectados por lamelas estromais, extensões que vão de um granum, através do estroma, até um granum vizinho. A membrana do tilacóide envolve uma região aquosa central conhecida como lúmen do tilacóide. O espaço entre a membrana interna e a membrana do tilacóide é preenchido com estroma, uma matriz contendo enzimas dissolvidas, grânulos de amido e cópias do genoma do cloroplasto. A maquinaria fotossintética A membrana tilacóide abriga clorofilas e diferentes complexos de proteínas, incluindo fotossistema I, fotossistema II e ATP (trifosfato de adenosina) sintase, que são especializados para fotossíntese dependente de luz. Quando a luz solar atinge os tilacóides, a energia da luz excita os pigmentos da clorofila, fazendo com que eles liberem elétrons. Os elétrons então entram na cadeia de transporte de elétrons, uma série de reações que conduzem a fosforilação do difosfato de adenosina (ADP) para o composto de armazenamento rico em energia ATP. O transporte de elétrons também resulta na produção do agente redutor nicotinamida adenina dinucleotídeo fosfato (NADPH). O ATP e o NADPH são usados nas reações independentes da luz (reações escuras) da fotossíntese, nas quais o dióxido de carbono e a água são assimilados em compostos orgânicos. As reações de fotossíntese independentes da luz são realizadas no estroma do cloroplasto, que contém a enzima ribulose-1,5-bisfosfato carboxilase/oxigenase (rubisco). A Rubisco catalisa a primeira etapa da fixação de carbono no ciclo de Calvin (também chamado de ciclo de Calvin-Benson), a principal via de transporte de carbono nas plantas. Entre as chamadas plantas C4, a etapa inicial de fixação de carbono e o ciclo de Calvin são separados espacialmente – a fixação de carbono ocorre por meio da carboxilação de fosfoenolpiruvato (PEP) em cloroplastos localizados no mesofilo, enquanto o malato, o produto de quatro carbonos desse processo, é transportado aos cloroplastos nas células da bainha do feixe, onde o ciclo de Calvin é realizado. A fotossíntese C4 tenta minimizar a perda de dióxido de carbono por fotorrespiração. Em plantas que usam o metabolismo do ácido crassuláceo (CAM), a carboxilação da PEP e o ciclo de Calvin são separados temporalmente em cloroplastos, o primeiro ocorrendo à noite e o último durante o dia. A via CAM permite que as plantas realizem a fotossíntese com perda mínima de água. Genoma do cloroplasto e transporte da membrana O genoma do cloroplasto é tipicamente circular (embora formas lineares também tenham sido observadas) e tem aproximadamente 120–200 quilobases de comprimento. O genoma do cloroplasto moderno, entretanto, é muito reduzido em tamanho: ao longo da evolução, um número crescente de genes do cloroplasto foi transferido para o genoma no núcleo da célula. Como resultado, as proteínas codificadas pelo DNA nuclear tornaram-se essenciais para a função do cloroplasto. Conseqüentemente, a membrana externa do cloroplasto, que é livremente permeável a pequenas moléculas, também contém canais transmembrana para a importação de moléculas maiores, incluindo proteínas codificadas por núcleo. A membrana interna é mais restritiva, com transporte limitado a certas proteínas (por exemplo, proteínas codificadas por núcleo) que são direcionadas para passagem através de canais transmembrana. Fonte: www.ducksters.com/www.geocities.com/alevelbiology.co.uk/Encyclopaedia Britannica/www.ncbi.nlm.nih.gov/www.wisegeek.org/biologydictionary.net/bio.libretexts.org/www.icb.ufmg.br